

|


|
|||
 |
 |
|||
|---|---|---|---|---|

| Распечатать |
Дизайн и in silico оценка свойств химерного фермента на основе ксиланазы Bacillus SP. 41M-1 и целлюлазы hypocrea jecorina VTT-D-80133

УДК 619:577.112:577.151:636.087.7
DOI 10.33861/2071-8020-2026-3-24-28
Оригинальное эмпирическое исследование
Мухаммадиев Риш. С. Федеральное государственное бюджетное научное учреждение «Всероссийский научно-исследовательский
институт фитопатологии», Московская область / Федеральное государственное бюджетное научное учреждение
«Федеральный центр токсикологической, радиационной и биологической безопасности», Республика Татарстан,
г. Казань
Мухаммадиев Рин. С. Хусаинова Г. И., Сорокина Д. А., Фазулзянов И. Р., Романова А. Н., Халикова К. Ф., Самсонов А. И.
Федеральное государственное бюджетное научное учреждение «Федеральный центр токсикологической,
радиационной и биологической безопасности», г. Казань
Аннотация. Настоящая работа посвящена дизайну и in silico оценке свойств химерного фермента на основе ксиланазы Bacillus sp. 41M-1 и целлюлазы Hypocrea jecorina VTT-D-80133. Для создания бифункционального гидролитического фермента проектировали пять вариантов химерных конструкций. При дизайне последних использовали каталитические домены гидролаз. В каждой конструкции на N-конце располагали аминокислотную последовательность указанного домена бактериальной ксиланазы, C-конце – грибной эндоглю-каназы. Соединение доменов фермента осуществляли, используя пять различающихся по составу линкерных последовательностей. Оценка структур вариантов химерного фермента в программе AlphaFold2, реализованной на платформе ColabFold, показала высокую достоверность их моделирования: значения показателя pLDDT составили 93,60-93,90, pTM - 0,65. Установлено, что использование (ЕАААК)3 и (GGGGS)3 обеспечило наибольшее расстояние между нуклеофилами бактериальной ксиланазы E177 и грибной целлюлазы E418 – 48,5 A и 45,4 A, соответственно.
Применение спейсера (PAPAP)3, согласно визуальному изучению модели программой UCSF ChimeraX и иерархическому кластерному анализу, приводило к уникальной ориентации доменов предложенной конструкции, при которой для ксиланазного домена достигалось наибольшее значение показателя SASA – 9187,9 A2.
Оценка потенциальных физико-химических свойств показала, что все варианты разрабатываемого химерного фермента имели схожий суммарный заряд (-19.0) и изоэлектрическую точку (4,7), а также близкие значения молекулярной массы (от 59,5 до 59,9 кДа), алифатического индекса (от 52,9 до 54,5), индексов нестабильности (от 29,2 до 34,8) и гидропатии (от -0,48 до -0,51). Дальнейшие исследования открывают перспективы применения разрабатываемого бифункционального химерного фермента в качестве добавки к корму сельскохозяйственной птицы.
Ключевые слова: in silico, дизайн, линкерные последовательности, AlphaFold2, свойства, химерный фермент, ксиланаза, целлюлаза, кормовая добавка, птицеводство
Потребность в высококачественной и безопасной продукции современного промышленного птицеводства в течение нескольких десятилетий повысилась: согласно прогнозам, объем производства бройлерного мяса в 2024 году составил более 103,0 млн тонн, ввиду чего оно стало ведущим источником животного протеина [1, 2]. Вместе с этим перед отраслью остро стоит задача поддержания высокого уровня продуктивности поголовья сельскохозяйственной птицы [2, 3]. В этом плане пристальное внимание исследователей направлено на вопросы полноценного сбалансированного питания и оптимизации биодоступности компонентов корма [4, 5], поскольку они способны гарантировать сохранение здоровья животных. Решение этих задач эффективно реализуется путем обогащения рационов птицы различными кормовыми добавками, в том числе и ферментными комплексами.
К настоящему времени для птицеводства разработан ряд ферментных добавок, направленных на снижение влияния антипитательных факторов рационов [6, 7]. Ксиланазы и целлюлазы, обеспечивающие процесс расщепления компонентов растительного происхождения вводятся в рационы птицам, у которых организм достаточно сложно усваивает структурные полисахариды (ксилан и целлюлозы) [8, 9]. Избыточная концентрация растворимых некрахмалистых полисахаридов, а именно гемицеллюлоз, способна приводить к высокой вязкости химуса кишечника животного, в особенности при применении зерна свежего урожая или полученного его в засушливые годы [10]. Следует отметить, что частичный гидролиз целлюлозы и гемицеллюлоз ферментами симбиотической микрофлоры, в частности бактериями рода Clostridium, осуществляется в слепых отростках кишечника птицы [3]. Однако это, как правило, оказывается физиологически недостаточным.
Интенсивное включение препаратов ксиланаз и целлюлаз, отмечаемое в последние годы, обусловлено тем, что кукурузу в рационах замещают зерновыми культурами, а также шротами и жмыхами [8, 10]. При последнем подходе создаются факторы для развития патогенной микрофлоры в кишечнике птицы: у них возникает существенный риск появления некротического энтерита [3, 11]. Помимо этого, наличие повышенного содержания в кормах некрахмалистых полисахаридов способно негативно влиять на костную ткань молодняка птицы в период интенсивного их роста [12, 13]. Указанный эффект связан со снижением в кишечнике животного уровня конъюгированных желчных кислот, что приводит к значительному ухудшению усвояемости жирорастворимого витамина D и, таким образом, нарушению обмена кальция и фосфора [3].
Микроорганизмы, способные разрушать ксилан и целлюлозу, довольно широко распространены в природе [14, 15]. К ним относят представителей грибов родов Trihoderma, Aspergillus и Fusarium, бактерий – Bacillus, Erwinia, Clostridium, и др. В промышленной биотехнологии наиболее используемыми продуцентами кормовых ферментов, обладающих кисланазной и целлюлазной активностями, являются грибы родов Trichoderma, Aspergillus и Penicillum, а также перспективными - Talaromyces и Humicola [16, 17].
Несмотря на значительную эффективность существующих в наше время моноферментных препаратов, современные биотехнологические подходы направлены на разработку химерных комплексов с бифункциональными свойствами [18, 19]. Подобные комплексы должны обладать синергическим эффектом. При этом в процессе конструирования химерных комплексов, которые включают в свой состав два гидролитических фермента разного происхождения, в частности ксиланазы и целлюлазы, важным фактором является их пространственное расположение [20, 21]. На последний параметр определяющее влияние могут оказывать линкеры – аминокислотные последовательности, соединяющие функциональные домены [19]. Они не только способны обеспечивать структурную стабильность создаваемой химерной конструкции, но и определять степень конформационной подвижности активных центров и, как следствие, каталитическую эффективность входящих в нее доменов.
Цель работы - дизайн и in silico оценка свойств бифункционального химерного фермента на основе ксиланазы Bacillus sp. 41M-1 и целлюлазы Hypocrea jecorina VTT-D-80133.
Материалы и методы исследования. Объектами исследования служили аминокислотные последовательности эндо-1,4-кси-ланазы бактерии Bacillus sp. (штамм 41M-1, UniProt ID: Q9RC94) и эндо-1,4-глюканазы EG-1 гриба Hypocrea jecorina (штамм VTT-D-80133/L27, UniProt ID: P07981).
Для создания бифункционального гидролитического фермента проектировали пять вариантов химерных конструкций. При дизайне последних использовали каталитические домены ферментов, исключая их нативные углевод-связывающие модули. В каждой конструкции на N-конце располагали аминокислотную последовательность указанного домена бактериальной ксила-назы, C-конце – грибной эндоглюканазы. Соединение доменов ферментов осуществляли, используя пять различающихся по физико-химическим свойствам [22, 23] и составу линкерных последовательностей (табл. 1).
Таблица 1 Характеристика различающихся по физико-химическим свойствам и составу линкерных последовательностей, использованных при конструировании химерного фермента
|
№ п/п |
Тип линкера |
Аминокислотная последовательность |
|---|---|---|
|
Л1 |
Жесткий |
EAAAKEAAAKEAAAK |
|
Л2 |
Жесткий |
PAPAPAPAPAPAPAP |
|
Л3 |
Гибкий |
GGGGSGGGGSGGGGS |
|
Л4 |
Умеренно гибкий (природный) |
TPTPTPTPTPTPTPT |
|
Л5 |
Комбинированный |
GGGGGEAAAKGGGGG |
|
Опыт 1 (стресс) |
100,0 |
98,78 |
|
Опыт 2 (путресцин+стресс) |
100,0 |
100,0 |
Пространственные структуры вариантов химерного фермента моделировали с использованием нейросетевой программы AlphaFold 2 (версия ColabFold) [24]. Для каждого варианта конструкции данная программа генерировала по пять моделей. Среди них выбирали модели с наиболее высокими показателями достоверности локальной укладки pLDDT (Predicted Local Distance Difference Test) и взаимного расположения доменов pTM (Predicted Template Modeling Score), а также низким значением ошибки PAE (Predicted Aligned Error) для дальнейшего анализа.
Визуальную оценку полученных структур химерного фермента проводили, применяя программу UCSF ChimeraX (версия 1.11.1) [25]. Расчёт расстояний между активными центрами доменов в вариантах конструкции и их доступность растворителю SASA (Solvent Accessible Surface Area) проводили с помощью встроенных инструментов указанной программы.
Возможные значения молекулярной массы каждого сконструированного варианта химерного фермента, их величины изоэлектрической точки, общего заряда, алифатического индекса, индексов нестабильности и гидропатии определяли в программе ProtParam (ресурс ExPASy; https://web.expasy.org/protparam/).
Результаты исследования и их обсуждение. На первом этапе исследования спроектированы пять вариантов бифункционального фермента, представляющего собой структуру из двух каталитических доменов, в которой ксиланаза штамма бактерии Bacillus sp. 41M-1 присоединена к N-концевой области целлюлазы штамма гриба Hypocrea jecorina VTT-D-80133 через различные линкерные последовательности (табл. 1). Такие конструкции, на наш взгляд, вполне должны обеспечить максимальную подвижность их доменов относительно друг друга.
Оценка структур вариантов химерного фермента в программе AlphaFold2, реализованной на платформе ColabFold, показала высокую достоверность их моделирования, достаточную для дальнейшей работы (рисунок 1).
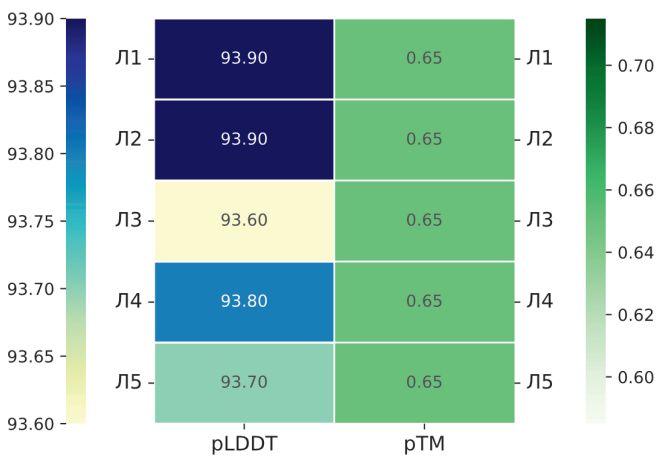
Рис. 1. Сравнительное изучение достоверности предсказания структур вариантов химерного фермента с различными линкерными последовательностями
Для всех предложенных конструкций значения показателя pLDDT составили 93,60-93,90, pTM - 0,65. Выявленные значения указанных показателей, согласно разработчикам алгоритма AlphaFold2 [24], свидетельствуют о чрезвычайно высокой достоверности предсказания укладки вариантов химерного фермента, которая сопоставима по точности с экспериментально изученными кристаллическими структурами белков, и взаимного расположения их каталитических доменов, независимо от типа используемого в исследовании линкера.
Особый интерес представлял вариант конструкции, содержащий линкерную последовательность (EAAAK)3. На визуализированной с помощью программы UCSF ChimeraX модели (рисунок 2, А) видно, что данный жесткий линкер формирует ?-спиральную структуру, которая, по-нашему мнению, способна обеспечить достаточно эффективное, по сравнению с другими спейсерами, пространственное разделение функциональных доменов - каталитических областей ксиланазы и целлюлазы в разрабатываемом химерном комплексе. При этом, согласно значениям показателя pLDDT (в среднем ниже 50,00 %) (рисунок 2, А и Г), участок линкера может обладать повышенной конформационной лабильностью [26], типичной для междоменных соединений. Подобное сочетание структурной жесткости самой спирали и ее подвижности в точках сочленения с каталитическими доменами ксиланазы и целлюлазы может снизить стерические затруднения, возникающие при одновременном гидролизе сложных субстратов обоими активными центрами химерного фермента.
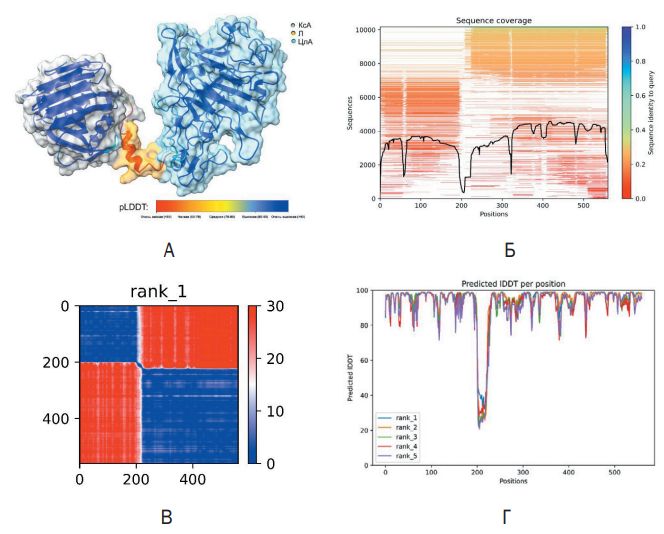
Рис. 2. Оценка качества пространственной модели бифункционального фермента на основе линкера (EAAAK)3, полученной с помощью AlphaFold2: А - визуализация структуры, окрашенной по уровню достоверности pLDDT. Указаны домены ксиланазы (КсА), целлюлазы (ЦлА) и линкерная последовательность (EAAAK)3 (Л). Б - покрытие аминокислотной последовательности гомологами (Sequence coverage) при построении множественного выравнивания. В - Матрица ожидаемой ошибки выравнивания (PAE) для наилучшей модели (rank_1). Г - распределение значений pLDDT по длине последовательности фермента для пяти моделей.
Нами отмечено в среднем 3900 гомологичных последовательностей для каждого каталитического домена химерного фермента на основе линкера (EAAAK)3 (рисунок 2, Б). Такое покрытие аминокислотной последовательности гомологами, обусловленное значительным количеством найденных алгоритмом сиквенсов, с высокой долей вероятности позволило достичь необходимой точности моделирования предложенной конструкции. Резкое снижение покрытия последовательности на 208-222-х позициях (в районе сочленения доменов), несомненно, отражает отсутствие природных аналогов используемого в работе линкерной последовательности.
Согласно данным матрицы РАЕ, мы наблюдали два выраженных блока, имеющие значения ожидаемой ошибки ниже 5,0 A (рисунок 2, В). Это указывает на высокую достоверность предсказания структуры каждого из каталитических доменов предложенной конструкции [27]. Выявленные относительно высокие значения ошибки (примерно 30,0 A) в междоменной области химерного фермента, скорее всего, - свидетельство пространственной независимости его доменов относительно друг друга.
Оценка распределения значений локальной достоверности по длине аминокислотной последовательности разрабатываемого химерного фермента (рисунок 2, Г) показала, что для большинства остатков его каталитических доменов значения показателя pLDDT были выше 90,00. Точность моделирования функциональных блоков конструкции очевидна [24]. Установленный нами профиль, который характеризуется значительным снижением значений показателя pLDDT (в среднем ниже 50,00) в интервалах позиции 208-222 а.о., соответствующем области расположения линкера, вероятно, указывает на высокую степень гибкости последнего при сохранении достаточно жесткой структурной организации самих ферментативных доменов.
Следует отметить, что для остальных вариантов химерных конструкций характер распределения вышеуказанных показателей (pLDDT, PAE, pTM и Sequence coverage) оказался схожим. При этом во всех случаях активные центры бактериальной ксилана-зы и грибной эндоглюканазы находились в состоянии пространственного разделения.
При разработке фермента с бифункциональными свойствами для его использования в качестве кормовой добавки в промышленном птицеводстве важным является обеспечение доступности активных центров входящих в него доменов, - в частности ксиланазы и целлюлазы, способных к расщеплению сложных субстратов корма птицы (отруби, шроты, зерновые компоненты, и др.). В связи с этим, на следующем этапе in silico дизайна нами количественно оценена доступность каталитических областей (SASA) спроектированных вариантов химерного фермента и определены расстоянии между их активными центрами с помощью кластерного анализа.
Результаты исследования выявили незначительное влияние различающихся по составу линкерных последовательностей на взаимное расположение функциональных доменов в предложенной конструкции и их доступность для растворителя (рисунок 3).
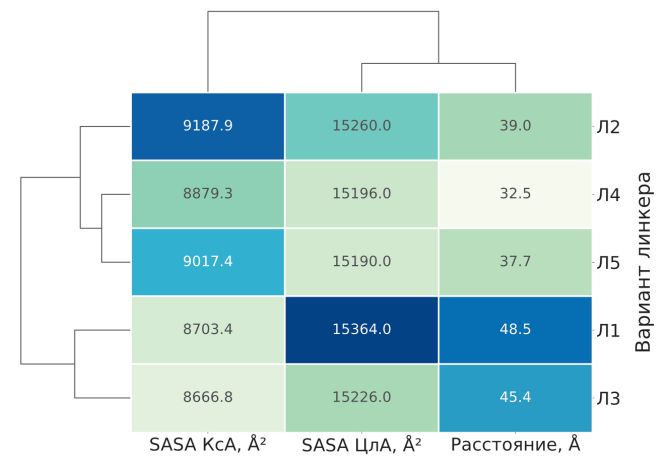
Рис. 3. Сравнительное изучение доступной площади поверхности каталитических доменов и расстояния между активными центрами в спроектированных конструкциях, содержащих различные типы линкерных последовательностей, с помощью иерархического кластерного анализа. Цветовая интенсивность дендограммы соответствует нормированным значениям показателей
Несмотря на существенное различие линкера (ЕАААК)3 и (GGGGS)3 в физико-химических свойствах [22, 23], варианты разрабатываемого химерного фермента на основе указанных спейсеров были объединены в один кластер. Использование обеих линкерных последовательностей обеспечило наибольшее расстояние между нуклеофилами бактериальной ксиланазы E177 и грибной целлюлазы E418 – 48,5 A и 45,4 A соответственно. При этом доступная поверхность каталитических доменов конструкции на основе линкера (ЕАААК)3 составила 15364,0 A?, в то время как (GGGGS)3 - 15226,0 A?.
На рисунке 4 представлена 3D-модель разрабатываемого бифункционального фермента на основе линкерной последовательности (ЕАААК)3, характеризующаяся наибольшим расстоянием между входящими в его состав основными каталитическими остатками Glu177 эндо-ксиланазы штамма Bacillus sp. 41M-1 и Glu418 эндо-глюканазы штамма Hypocrea jecorina VTT-D-80133.
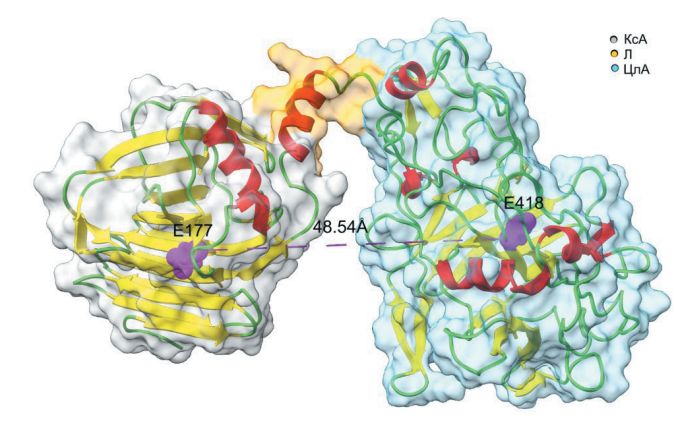
Рис. 4. Пространственная модель разрабатываемого бифункционального фермента на основе линкерной последовательности (ЕАААК)3. Вторичная структура доменов фермента показана в виде ленточной модели: ?-спирали, ?-тяжи и петли окрашены соответственно в красный, желтый и зеленый цвета. Поверхность домена ксиланазы (КсА) показана серым цветом, домена целлюлазы (ЦлА) - голубым, линкера (Л) - оранжевым. Розовыми сферами выделены каталитические нуклеофилы E177 и E418 для соответственно ксиланазы и целлюлазы. Пунктирная линия указывает расстояние между основными каталитическими остатками.
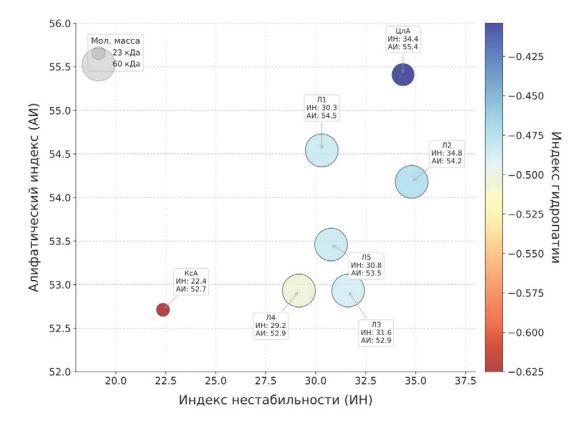
Рис. 5. Сравнительное изучение потенциальных физико-химических свойств вариантов химерного фермента с различными типами линкерных последовательностей с помощью многофакторного анализа. Диаметр пузырьков на диаграмме прямо пропорционален молекулярной массе исследуемого фермента (наименьший размер - домен бактериальной ксиланазы, 22,8 кДа). Цветовая шкала отражает значения индекса гидропатии: более отрицательные значения указывают на сравнительно высокую гидрофильность молекулы.
Вариант химерного фермента, в котором каталитические центры бактериальной ксиланазы и грибной целлюлазы соединены между собой линкерной последовательностью (PAPAP)3, занимал обособленное положение на дендрограмме (рисунок 3). Обладая жесткой структурой, отличной от ?-спирали линкера (ЕАААК)3, данный линкер, согласно кластерному анализу, обеспечивал уникальную ориентацию доменов предложенной конструкции, при которой для ксиланазного домена достигалось наибольшее значение показателя SASA – 9187,9 A?. Это может свидетельствовать о том, что при использовании пролин-богатой последовательности в качестве линкера, скорее всего, происходит разворот каталитических центров химерного фермента, обеспечивающий наиболее эффективную экспонированность поверхности домена ксиланазы по сравнению с остальными примененными в исследовании спейсерами.
Варианты химерного конструкции на основе природного и комбинированного линкеров формировали на дендограм-ме отдельную группу, вероятно, характеризующуюся наиболее компактной укладкой фермента с относительно низкими расстояниями между нуклеофилами бактериальной ксиланазы и грибной целлюлазы – соответственно 32,5 и 37,7 A. По сравнению с остальными предложенными вариантами фермента, для этих конструкций также отмечали наименьшие значения SASA целлюлазного домена, составившие 15196,0 A? и 15190,0 A?, соответственно.
Следовательно, сравнительное исследование моделей показало, что выбор линкерной последовательности может изменять дистанцию между каталитическими центрами в диапазоне более 16,0 A, что открывает возможности для процесса оптимизации синергетического эффекта доменов разрабатываемого нами химерного фермента. Хотя все варианты химерного фермента обеспечивали доступность к его активным центрам, использование линкера (ЕАААК)3, на наш взгляд, способно снижать вероятность конкуренции каталитических доменов за доступ к субстрату – то есть за посадочное место на поверхности нерастворимых полисахаридов (ксилана и целлюлозы) корма сельскохозяйственной птицы. Тем не менее, данное предположение требует проведения дополнительных in silico, in vitro и in vivo исследований.
Оценка потенциальных физико-химических свойств показала, все варианты разрабатываемого химерного фермента имели схожий суммарный заряд (-19.0) и изоэлектрическую точку (4,7), а также близкие значения молекулярной массы (от 59,5 до 59,9 кДа), алифатического индекса (от 52,9 до 54,5), индексов нестабильности (от 29,2 до 34,8) и гидропатии (от -0,48 до -0,51) (рисунок 5).
Согласно данным многофакторного анализа, наиболее сбалансированными свойствами, по-нашему мнению, обладал вариант конструкции на основе линкера (ЕАААК)3: он сочетает в себе сравнительно высокий алифатический индекс (54,54) и умеренную стабильность (30,30).
Указанные величины показателей свидетельствуют о возможной хорошей растворимости всех вариантов предложенных конструкций и низкой склонности к неспецифической их агрегации. Этот факт открывает перспективы для экспрессии разрабатываемого фермента в дрожжевых системах [28].
Выявленные величины изоэлектрической точки вариантов химерных конструкций значительно ниже физиологических значений pH (6,0-7,5) [29] в тонком кишечнике сельскохозяйственной птицы. Данная разница способна обеспечивать молекулам разрабатываемого нами фермента высокий отрицательный заряд (до значений – 19,0), что потенциально должна способствовать их хорошей растворимости и необходимой каталитической активности в условиях кишечника животного. Вместе с тем, схожие значения изоэлектрической точки вариантов предложенных конструкций с уровнем pH, имеющемся в зобе и мышечном желудке птицы (pH 2,5-5,0) [29], могут, скорее всего, приводить к временному снижению их растворимости в данных отделах, что, с другой стороны, способно защитить химерный фермент от преждевременного протеолиза до его поступления в основной отдел кишечника птицы.
Заключение. Комплексное изучение структурных и физико-химических свойств спроектированных нами конструкций показало, что последние перспективны для дальнейшего экспрес-сионного анализа в дрожжевых системах. В качестве наиболее сбалансированного по указанным характеристикам представляет вариант химерной конструкции на основе линкера (EAAAK)3. Визуальная оценка модели фермента, полученной в программе AlphaFold2, и оценка расстояния между входящими в нее каталитическими Glu177 эндо-ксиланазы штамма Bacillus sp. 41M-1 и Glu418 эндо-глюканазы штамма Hypocrea jecorina VTT-D-80133 указывают на пространственную независимость их активных центров. Это должно, на наш взгляд, обеспечить эффективную синергию доменов разрабатываемого бифункционального фермента при расщеплении сложных некрахмалистых полисахаридов кормов сельскохозяйственной птицы. Вместе с тем, вариант химерного фермента, в котором домены соединены между собой природным линкером, также представляет интерес. Судя по данным индекса нестабильности, он, обладая относительно компактной организацией, может характеризоваться повышенной сохранностью к условиям пищеварительного тракта животного.
Список литературы:
1. Queenan K., Hasler B. Climate change and campylobacteriosis from chicken meat: The changing risk factors and their importance. Food Control. 2025; (173): 111193. DOI: 10.1016/j.foodcont.2025.111193.
2. Мухаммадиев Р. С., Валиуллин Л. Р., Барышев М. Г. [и др.]. Продуктивность, иммунный статус и микробиота кишечника цыплят-бройлеров при включении в рацион пробиотиков на основе Lactiplantibacillus plantarum SG66 и/или GA24. Известия Тимирязевской сельскохозяйственной академии. 2025; (1): 182-200. DOI: 10.26897/0021-342X-2025-1-182-200.
3. Феоктистова Н. В., Марданова А. М., Лутфуллин М. Т. [и др.]. Биопрепараты микробного происхождения в птицеводстве. Ученые записки Казанского университета. Серия Естественные науки. 2018; 160 (3): 395-418.
4. Корягина А. О., Бульмакова Д. С., Сулейманова А. Д. [и др.]. Бактериальные ферменты как потенциальные кормовые добавки в птицеводстве. Ученые записки Казанского университета. Серия Естественные науки. 2019; 161 (3): 459-471. DOI: 10.26907/2542-064X.2019.3.459-471.
5. Alabi T., Adedokun S. Amino acid nutrition in poultry: A review. Animals (Basel). 2025; 15 (22): 3323. DOI: 10.3390/ani15223323.
6. Cai Y., Zhang M., Hamada O. et al. Multi-enzyme supplementation enhances performance, intestinal and skeletal development in broilers fed low-nutrient diets. Poult. Sci. 2026; 105 (2): 106234. DOI: 10.1016/j.psj.2025.106234.
7. Giacobbo F. C. N., Eyng C., Nunes R. V. et al. Influence of enzyme supplementation in the diets of broiler chickens formulated with different corn hybrids dried at various temperatures. Animals (Basel). 2021; 11 (3): 643-662. DOI: 10.3390/ani11030643.
8. Nguyen X. H., Nguyen H. T., Morgan N. K. Dietary soluble non-starch polysaccharide level and xylanase supplementation influence performance, egg quality and nutrient utilization in laying hens fed wheat-based diets. Anim. Nutr. 2021; 7 (2): 512-520. DOI: 10.1016/j.aninu.2020.05.012.
9. Perim F. D. S., da Silva W. J., de Souza D. O. et al. Effects of the addition of Trichoderma reesei Cellulase to broiler chicken diets for a 21-day period. Animals (Basel). 2024; 14 (10): 1467-1485. DOI: 10.3390/ani14101467.
10. Комаров А. А., Телишевская Л. Я., Сарханова А. А. [и др.]. Вискозиме-трическое определение эндоглюканазной активности ферментных кормовых добавок. Сельскохозяйственная биология. 2016; 51 (2): 223-229. DOI: 10.15389/ agrobiology.2016.2.223rus.
11. Kim E., Moss A. F., Morgan N. K. et al. Ileal profile of non-starch polysaccharides and oligosaccharides in response to exogenous enzymes in broiler chickens offered wheat- or maize-based diets under subclinical necrotic enteritis challenge. Anim. Nutr. 2022; (10): 207-215. DOI: 10.1016/j.aninu.2022.03.005.
12. Skrivan M., Englmaierova M., Marounek M. [et al.]. Dietary supplementation with xylanase suppresses the antinutritional effect of nonstarch polysaccharides of flaxseed and increases bone strength in broiler chickens. PLoS One. 2024; 19 (11): e0312950. DOI: 10.1371/journal.pone.0312950.
13. Tomaszewska E., Schwarz T., Tomczyk-Warunek A. et al. Analysis of mechanical properties of bones and tendons shows that modern hybrid rye can be introduced to corn-wheat based diet in broiler chickens as an alternative energy source irrespective of xylanase supplementation. Poultry Science. 2019; 98 (11): 5613-5621. DOI: 10.3382/ ps/pez32.
14. Мухаммадиев Р. С., Мухаммадиев Р. С., Валиуллин Л. Р. [и др.]. Молочнокислые и спорообразующие бактерии: формирование сообществ как основы функциональных добавок с пробиотическими свойствами для птицеводства. Ветеринария Кубани. 2023; (2): 30-36. DOI: 10.33861/2071-8020-2023-2-30-36.
15. Валиуллин Л. Р., Мухаммадиев Р. С., Мухаммадиев Р. С. [и др.]. Выделение, очистка и изучение физикохимических свойств ксиланазы штамма Bacillus subtilis 9. Достижения науки и техники АПК. 2021; 35 (10): 66-71. DOI: 10.53859/023524 51_2021_35_10_66.
16. Liu D., Garrigues S., de Vries R. P. Heterologous protein production in filamentous fungi. Appl. Microbiol. Biotechnol. 2023; 107 (16): 5019-5033. DOI: 10.1007/s00253-023-12660-8.
17. Arnau J., Yaver D., Hjort C. M. Strategies and challenges for the development of industrial enzymes using fungal cell factories. Grand Challenges in Fungal Biotechnology. 2019; 179-210. DOI: 10.1007/978-3-030-29541-7_7.
18. Ariaeenejad S., Zeinalabedini M., Sadeghi A. et al. Enhancing nutritional and potential antimicrobial properties of poultry feed through encapsulation of metagenome-derived multi-enzymes. BMC Biotechnol. 2024; 24 (1): 76. DOI: 10.1186/ s12896-024-00904-y.
19. Yao J., Ouyang B., Ni D. et al. Construction and application of a bifunctional enzyme for the simultaneous enzymatic transformation of zearalenone and deoxynivalenol. Int. J. Biol. Macromol. 2025; 322 (Pt 2): 146534. DOI: 10.1016/j. ijbiomac.2025.146534.
20. Kenfack Ymbe P., Cere C., Delord B. et al. Bifunctional chimeras of myeloperoxidase and glucose oxidase. Antimicrobial, topological and enzymatic properties. J. Biotechnol. 2025; (399): 127-140. DOI: 10.1016/j.jbiotec.2025.01.018.
21. Liu X., Yang R., Ren L. et al. Structural basis for targeting the bifunctional enzyme ArnA. Biomolecules. 2025; 15 (11): 1594-1615. DOI: 10.3390/biom15111594.
22. Chen X., Zaro J. L., Shen W. C. Fusion protein linkers: property, design and functionality. Adv. Drug Deliv. Rev. 2013; 65 (10): 1357-1369. DOI: 10.1016/j. addr.2012.09.039.
23. Xiang J., Liu M., Wang X. et al. Combined metabolic and enzymatic engineering for de novo biosynthesis of ?-tocotrienol in Yarrowia lipolytica. Synth Syst Biotechnol. 2025; (10): 719–727. DOI: 10.1016/j.synbio.2025.02.011.
24. Mirdita M., Schutze K., Moriwaki Y. et al. ColabFold: making protein folding accessible to all. Nat. Methods. 2022; 19: 679-682. DOI: 10.1038/s41592-022-01488-1.
25. Meng E. C., Goddard T. D., Pettersen E. F. et al. Tools for structure building and analysis. Protein Sci. 2023; 32 (11): e4792. DOI: 10.1002/pro.4792.
26. Tunyasuvunakool K., Adler J., Wu Z. et al. Highly accurate protein structure prediction for the human proteome. Nature. 2021; 596 (7873): 590-596. DOI: 10.1038/s41586-021-03828-1.
27. Varadi M., Anyango S., Deshpande M. et al. AlphaFold protein structure database: massively expanding the structural coverage of protein-sequence space with high-accuracy models. Nucleic Acids Res. 2022; 50 (1): 439-444. DOI: 10.1093/nar/gkab1061.
28. Gasser B., Saloheimo M., Rinas U. et al. Protein folding and conformational stress in microbial cells producing recombinant proteins: a host comparative overview. Microb. Cell Fact. 2008; (7): 11-29. DOI: 10.1186/1475-2859-7-11.
29. Мухаммадиев Р. С., Мухаммадиев Р. С., Валиуллин Л. Р. [и др.]. Выживаемость ассоциаций микроорганизмов на основе биосовместимых штаммов молочнокислых и спорообразующих бактерий в условиях in vitro, аналогичных для различных отделов пищеварительного тракта сельскохозяйственной птицы. Достижения науки и техники АПК. 2024; 38 (6): 39-45.
Сведения об авторах:
Мухаммадиев Ринат Салаватович, кандидат биологических наук, старший научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБ-НУ «Федеральный центр токсикологической, радиационной и биологической безопасности», 420075, г. Казань, ул. Научный городок-2; тел.: 8-987-4214127; е-mail: tanirtashir@mail.ru.
Хусаинова Гульнара Ильдусовна, кандидат биологических наук, старший научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, Научный городок-2; тел.: 8-917-2627283; е-mail: Gulnarai13@yandex.ru.
Сорокина Диана Анатольевна, аспирант, младший научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, ул. Научный городок-2; тел.: 8-927-8875729; е-mail: diana-sorokina2013@mail.ru
Фазулзянов Ильшат Рафаилевич, кандидат биологических наук, научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, ул. Научный городок-2; тел. 8-950-316-5677; е-mail: fazulrif@mail.ru.
Романова Алиса Николаевна, младший научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, ул. Научный городок-2; тел.: 8-902-1077198; е-mail: alisaromanova586@gmail.com.
Халикова Кадрия Фагимовна, кандидат ветеринарных наук, старший научный сотрудник отделения токсикологии ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, Научный городок-2; тел.: 8-962-5578329; е-mail: k.khalikova@mail.ru.
Самсонов Андрей Иванович, кандидат биологических наук, ведущий научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, ул. Научный городок-2; тел. 8-950-3167638; е-mail: andreykaz82@yandex.ru.
Ответственный за переписку с редакцией: Мухаммадиев Ришат Салаватович, кандидат биологических наук, старший научный сотрудник прикладной и экспериментальной микробиологии ФГБНУ «Всероссийский научно-исследовательский институт фитопатологии»; отделения вирусологических и ультра-структурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности», 420075, г. Казань, ул. Научный городок-2; тел.: 8-939-3728789; е-mail: tashir9891@mail.ru.
Заявленный вклад авторов:
Мухаммадиев Риш.С.: разработка концепции, научное руководство, написание черновика рукописи
Мухаммадиев Рин.С.: административное руководство исследовательской работой, проведение исследования, написание рукописи – редактирование.
Хусаинова Г.И.: курирование данных.
Сорокина Д.А.: разработка методологии, визуализация.
Фазулзянов И.Р.: формальный анализ
Романова А.Н.: визуализация.
Халикова К.Ф.: проведение исследования.
Самсонов А.И.: валидация результатов
Конфликт интересов: авторы заявляют об отсутствии конфликта интересов.
| 2026 © Ветеринария Кубани | Разработка сайта - Интернет-Имидж | |
|---|---|---|